
| 名前 | ウミユリ(海百合)。学名はウミユリ綱 Crinoidea で、ギリシャ語の「ユリ(krinon)」と「形(eidos)」から「ユリに似たもの」の意味 |
| 分類 | 棘皮動物門 ウミユリ綱(ウニ、ヒトデ、クモヒトデ、ナマコと同じ門) |
| 時代 | オルドビス紀前期(約4億8500万〜4億7800万年前)〜現在 |
| 発見地 | 世界各地の海の地層。最古級の化石はアメリカ・ユタ州 |
| 大きさ | 現生のトリノアシで茎の長さ30〜50cm。ジュラ紀のセイロクリヌスは茎が最長で約20m |
| 現生種 | 茎のあるウミユリは100種未満、茎をもたないウミシダ類は500種以上 |
ウミユリは、ウニやヒトデと同じ棘皮動物のなかまです。海底から伸びた茎の先に羽のような腕を広げた姿は花にそっくりですが、植物ではなく、腕でプランクトンをとらえて食べる動物です。確実な最古の化石は約4億8000万年前のオルドビス紀前期の地層から見つかっていて、現在も深い海に生き残っています。長いあいだ「海底に根を下ろして動かない動物」と考えられてきましたが、1990年代に潜水艇のカメラが、腕で海底を這って移動する姿を記録しました。
花に見える体のつくり
体は下から、茎、萼(がく)、腕の3つの部分に分かれます。茎は、方解石でできた円盤状の小さな骨(茎板)がコインを積むように何十枚、何百枚と重なったもので、根元や途中から出る巻枝(まきえだ)で岩をつかんで体を支えます。茎の先にあるカップ状の萼に内臓が収まり、そこから腕が伸びます。腕の基本は5本で、多くの種では枝分かれして数十本になります。体のつくりが5方向に放射状に並ぶのは、ヒトデやウニと同じ棘皮動物の特徴です。
腕には羽枝(うし)と呼ばれる細い枝がびっしり並び、その表面の管足(かんそく)が水中のプランクトンや有機物の粒をとらえます。とらえた粒は腕の内側を走る溝に乗せられ、萼の中央にある口まで運ばれます。口は上を向いていて、肛門も同じ上の面に開いています。ヒトデは口を下に向けて海底を這いますが、ウミユリはそれを裏返して茎の上に載せた向きで暮らしています。流れのある場所では、腕をパラボラアンテナのように広げて流れに向け、通り過ぎる粒をこし取ります。
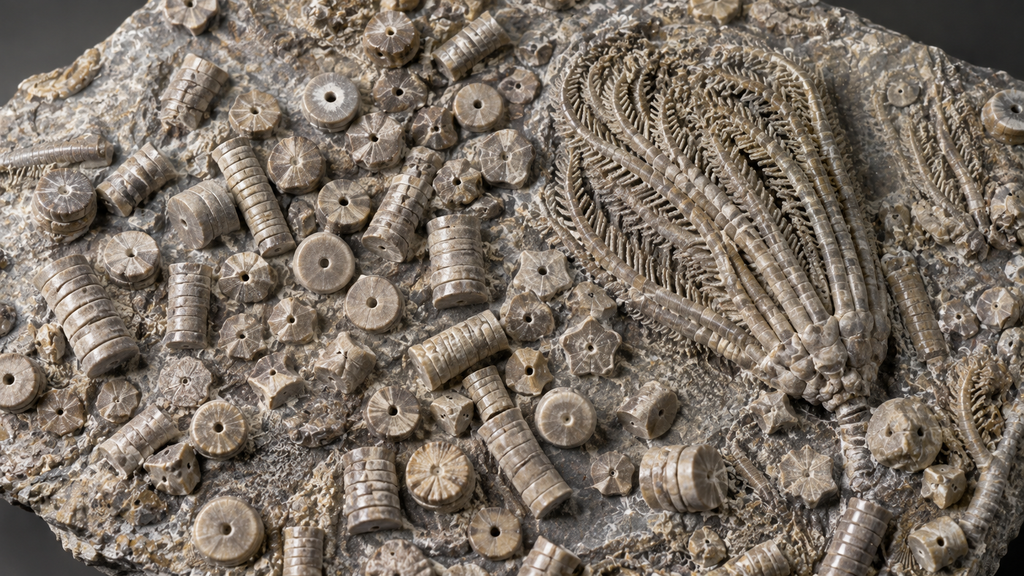
骨どうしは靭帯などのやわらかい組織でつながっているだけなので、死ぬと体はすぐにばらばらになります。そのため化石の多くは全身ではなく、ばらけた茎板です。中央に穴のあいた円盤形や星形をしていて、イギリスでは糸を通して数珠にされ、「聖カスバートの数珠玉」と呼ばれてきました。
古生代の浅い海に広がったウミユリの林
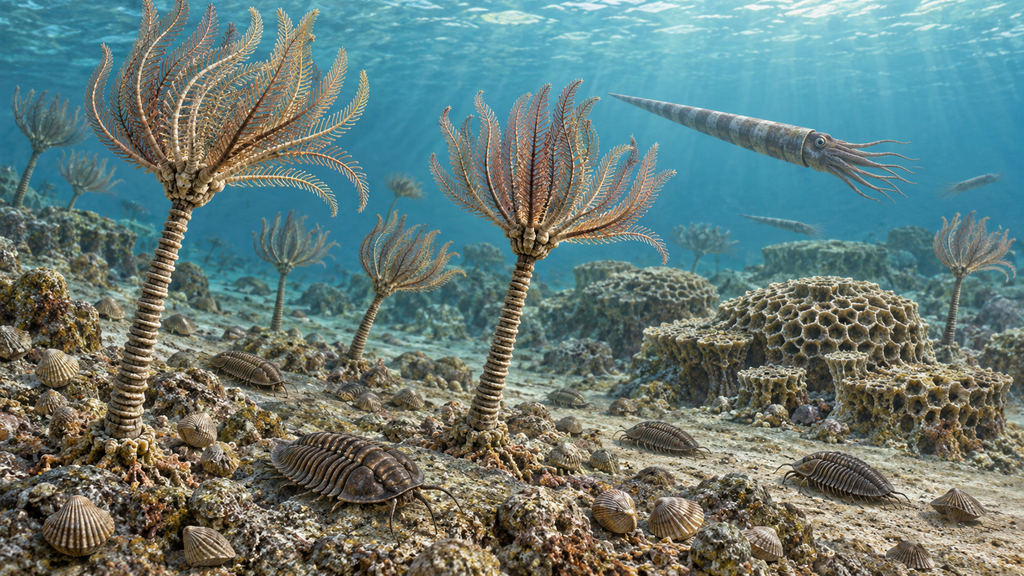
最古級のウミユリは、アメリカ・ユタ州のオルドビス紀最初期(トレマドキアン、約4億8540万〜4億7770万年前)の地層から見つかっています。ただし化石の数は少なく保存も不完全で、どの棘皮動物から分かれてきたのかは今も議論が続いています。オルドビス紀は海の動物の種類が急に増えた時代で、ウミユリもこの時期に一気に多様化しました。当時の浅い海には三葉虫や腕足動物、まっすぐな殻をもつ頭足類、床板サンゴがいて、ウミユリはその上に腕を広げ、海底から少し高いところを流れる粒を食べていました。
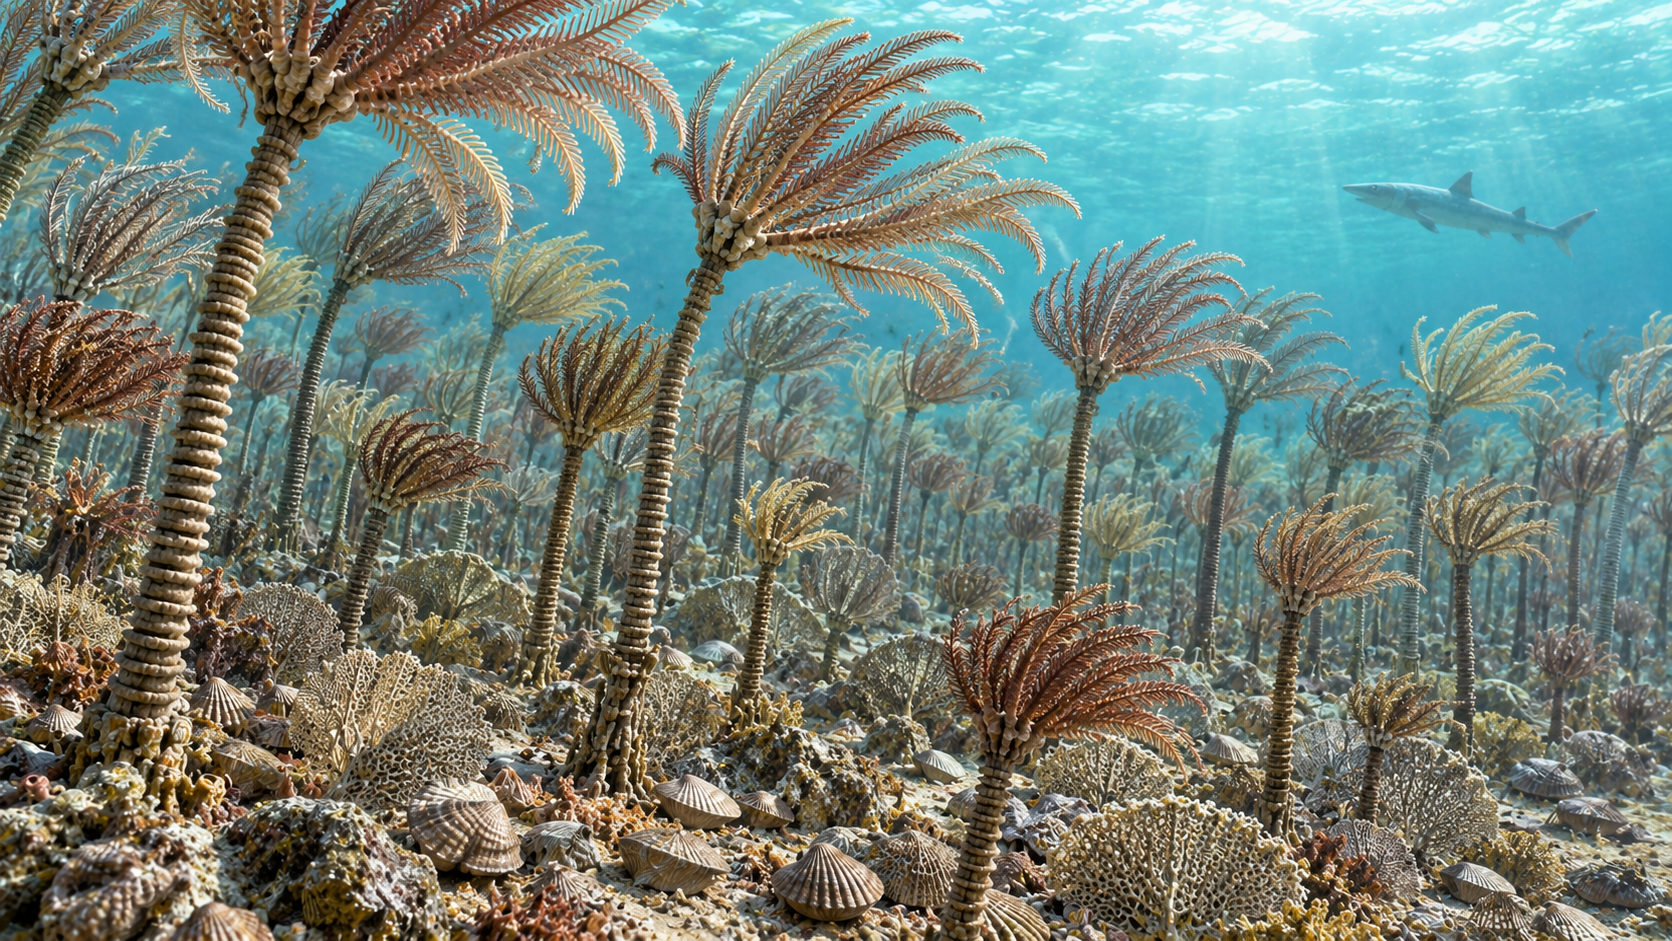
繁栄の頂点は石炭紀の前期で、この時期は「ウミユリの時代」と呼ばれます。浅い海の底にウミユリが林のように密生し、死んでばらけた茎板が積もって、それだけで厚い石灰岩の層ができました。日本でも、岐阜県の金生山などの古生代の石灰岩から茎の化石が見つかります。
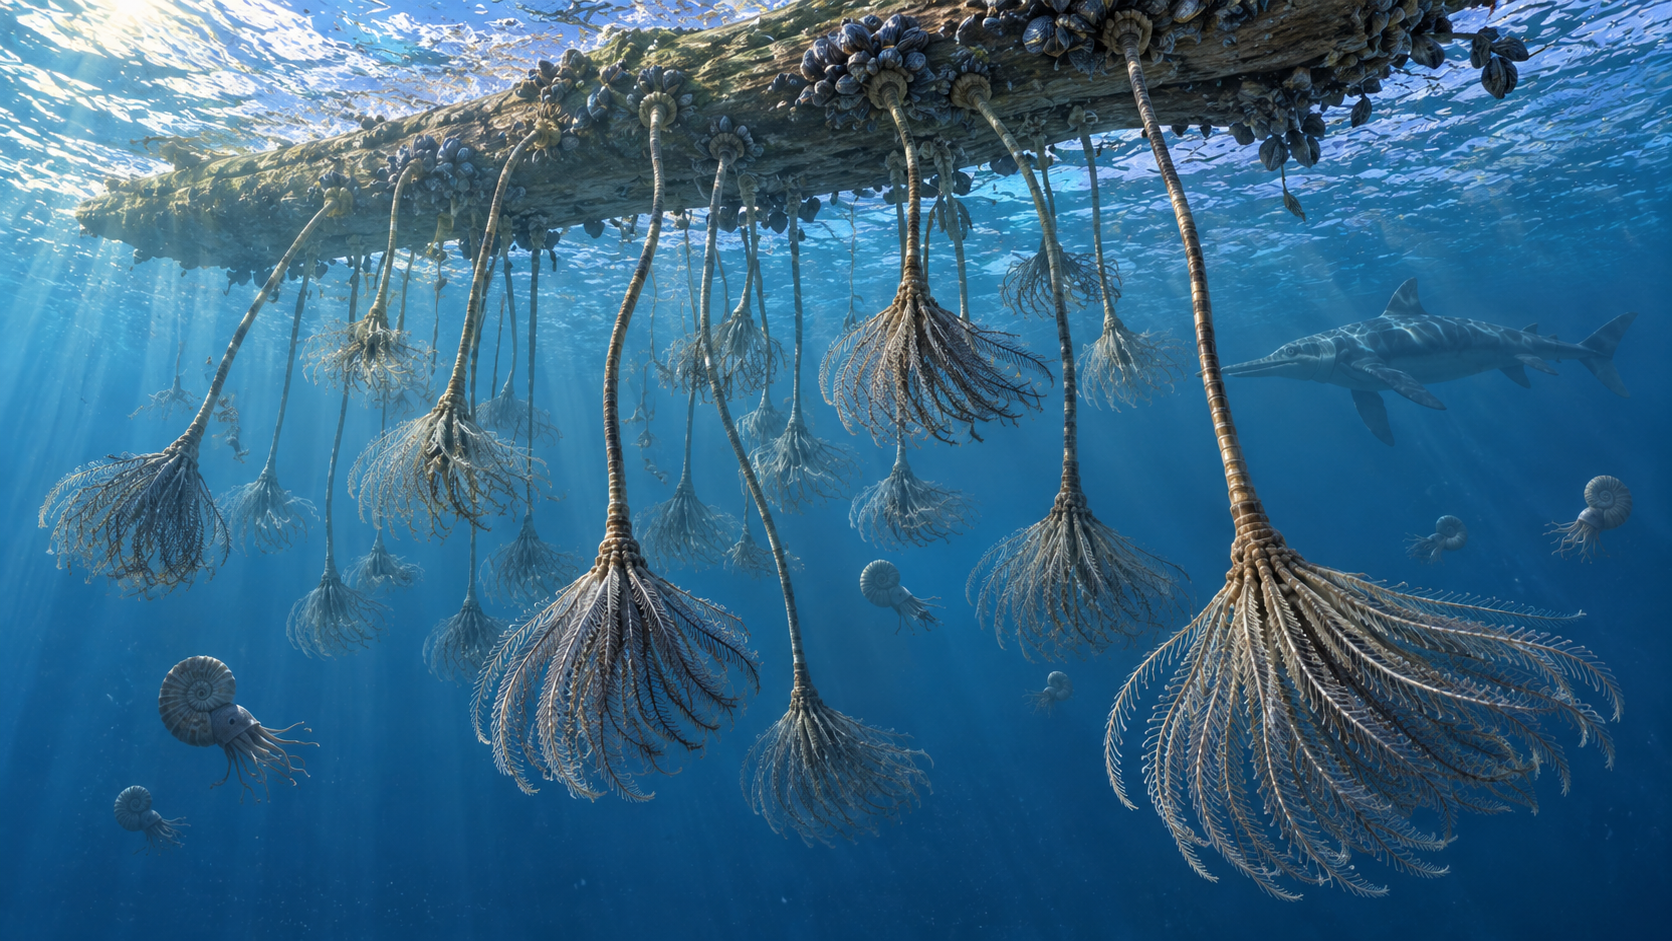
約2億5200万年前のペルム紀末の大量絶滅で、ウミユリはほとんど姿を消しました。現在生きているウミユリとウミシダは、すべてこのとき生き残った一つの系統(関節亜綱)の子孫です。その後の中生代には、変わった暮らし方をするものも現れました。ジュラ紀前期のセイロクリヌスは、海面を漂う流木にぶら下がって暮らしたと考えられているウミユリで、茎の長さは最長で約20mに達しました。ドイツのホルツマーデンからは、流木ごと化石になった群れが見つかっています。
深い海のウミユリと、浅い海のウミシダ
現生の茎のあるウミユリは100種に満たず、すべて水深100mより深い海にすんでいます。これに対して、成長の途中で茎を捨てるウミシダ類は500種以上が知られ、サンゴ礁の浅瀬から深海まで広く分布します。ウミシダは腕で海底を這い、種によっては腕を交互に打ち振って短い距離を泳ぎます。
日本近海でふつうに見られるウミユリはトリノアシ(Metacrinus rotundus)です。茎の長さは30〜50cm、腕は約50本に枝分かれし、相模湾や紀伊水道、駿河湾などの水深100〜500mほどの海底にすんでいます。茎のあるウミユリとしては世界的に見ても浅い場所にいるため、採集して水槽で飼うことができ、日本は生きたウミユリの行動を調べる研究の中心地のひとつになっています。
「動かない動物」が這って逃げた
茎のあるウミユリが動けるのかどうかは、19世紀から議論されてきました。茎の根元を岩に塗り固めない種類がいることから、1837年にはイギリスの地質学者バックランドが化石のウミユリを「移動する動物」と書いています。しかし実際に動く姿を見た人はおらず、1987年に出た棘皮動物の教科書でも、現生の茎のあるウミユリは「自由生活だが移動能力はない」と書かれていました。
1980年代の終わりから1990年代の初めにかけて、カリブ海での現場観察と水槽実験から、ゴカクウミユリ類が腕を使って這い、茎を後ろに引きずって場所を変えることが初めて確かめられました。1994年にはビレンハイデと本川達雄が、水槽のトリノアシの這い方を詳しく記録しています。ただしその速さは1時間に約0.5m、毎秒にすると約0.1mmで、肉眼では動いていることが分からない程度でした。
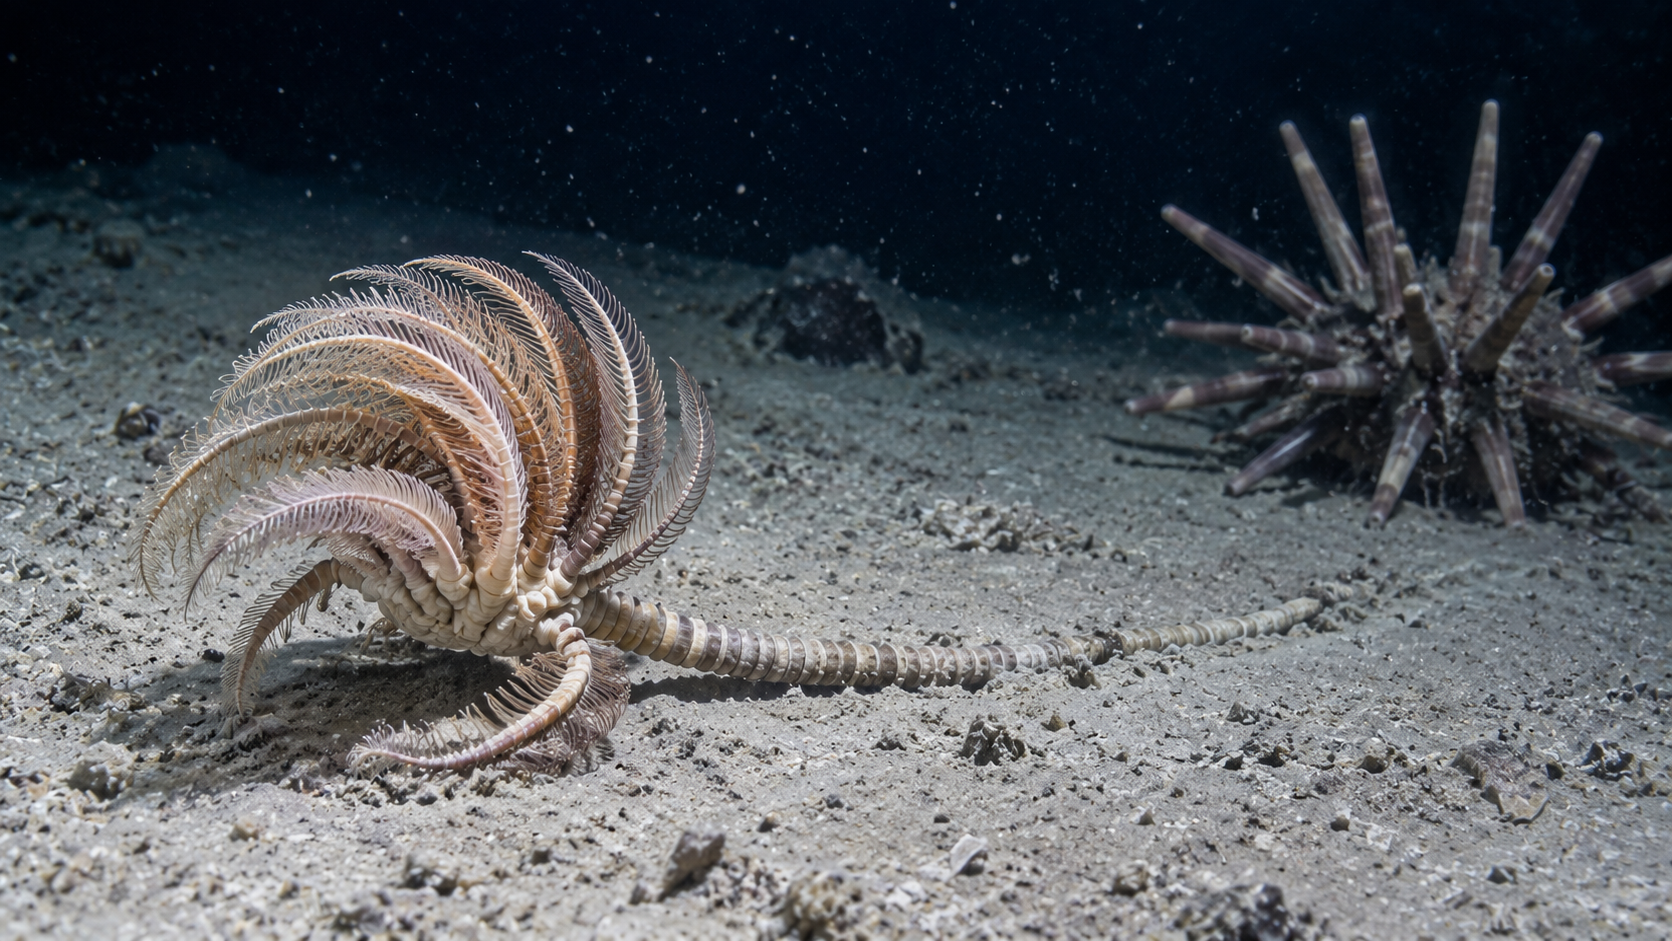
これを塗り替えたのが、ミシガン大学のボーミラーとノバ・サウスイースタン大学のメッシングが、1991年から1998年にかけて潜水艇「ジョンソン・シーリンク」で撮影した映像です。バハマ諸島グランドバハマ島沖の水深約420mで、ネオクリヌス・デコルスというウミユリが、5分弱のあいだに3m以上を這って進む様子が記録されました。平均で毎秒約10mm、速いときは毎秒約30mmで、それまで知られていた速さの約100倍にあたります。水槽で観察されていた這い方が腕の先だけで海底を引っかくものだったのに対し、映像のウミユリは腕全体を背中側に強く反らせ、腕の中ほどを海底に押しつけて漕ぐように進んでいました。通ったあとの海底には、茎を引きずった跡が残っていました。この観察は2007年に論文として報告されています。
逃げる相手と考えられているのは、オウサマウニのなかまです。同じ海底にいるこのウニの消化管からはウミユリの骨が見つかっており、生きたウミユリを食べることが潜水艇からの観察と飼育実験で確かめられています。毎秒0.1mmではウニから逃げられませんが、毎秒10〜30mmなら逃げ切れます。ボーミラーらは、茎の下の部分を自分で切り離し、身軽になって這って離れるという一連の動きを、トカゲの尻尾切りと同じ型の逃げ方だと説明しています。
この追いかけっこは、化石でもさかのぼれます。ウニにかじられたウミユリの骨には特有の傷が残り、同じ傷がポーランドの三畳紀のウミユリ化石から見つかっています(2010年)。ウミユリはペルム紀末に絶滅しかけたあと、三畳紀の中期から後期にかけて再び多様化しますが、このとき現れたのが、這う、泳ぐ、漂うといった動ける型でした。その後の研究では、中生代を通じて茎の化石に残るかじり跡の割合がウニの多様性と足並みをそろえて増減し、ウニが増えるほど動ける型のウミユリが増え、固着する型が減っていたことも示されています(2012年)。2020年には名古屋大学の大路樹生らが、ユタ州の約2億5000万年前の地層で、ウミユリの腕の化石のそばに放射状と平行の引っかき模様を見つけました。駿河湾で採集したトリノアシが自分で切り落とした腕が、水槽の砂の上をのたうって残した模様と同じ形で、襲われたときに腕を切り捨てる行動が、三畳紀の初めにはすでに始まっていたことを示しています。
古生代のウミユリは大半が固着して動かない型でしたが、ペルム紀末の絶滅を境に、動ける型が属の数で半分以上を占めるようになりました。茎のあるウミユリは中生代の後半以降、浅い海からほとんど姿を消して深い海に残り、現在の浅い海にいるのは、茎を捨てて最もよく動けるようになったウミシダです。
出典
Baumiller, T. K. & Messing, C. G. (2007) Stalked crinoid locomotion, and its ecological and evolutionary implications. Palaeontologia Electronica 10(1), 2A. https://palaeo-electronica.org/2007_1/crinoid/(這うウミユリの映像も公開されています)
Baumiller, T. K. et al. (2010) Post-Paleozoic crinoid radiation in response to benthic predation preceded the Mesozoic marine revolution. PNAS 107, 5893–5896. https://www.pnas.org/doi/10.1073/pnas.0914199107
Gorzelak, P., Salamon, M. A. & Baumiller, T. K. (2012) Predator-induced macroevolutionary trends in Mesozoic crinoids. PNAS. https://www.pnas.org/doi/10.1073/pnas.1201573109
名古屋大学プレスリリース(2020年9月24日)「切れた腕が動き回る。ウミユリの対捕食者戦略は2億5000万年前に始まっていた」 https://www.nagoya-u.ac.jp/about-nu/public-relations/researchinfo/upload_images/20200924_num1.pdf/論文:Gorzelak, P. et al. (2020) Scientific Reports 10, 15147. https://doi.org/10.1038/s41598-020-72116-1
Guensburg, T. E. et al. (2020) Athenacrinus n. gen. and other early echinoderm taxa inform crinoid origin and arm evolution. Journal of Paleontology 94(2), 311–333. https://doi.org/10.1017/jpa.2019.87
Microstructural design of the stalk in the crinoid Seirocrinus supports its pseudoplanktonic lifestyle. Scientific Reports (2025). https://www.nature.com/articles/s41598-025-16412-8
黒潮生物研究所「トリノアシ」 https://kuroshio.or.jp/creature/トリノアシ/
「日本産有柄海百合類, トリノアシ Metacrinus rotundus の駿河湾における写真観察」日本海洋学会誌 43(6). https://www.jstage.jst.go.jp/article/kaiyou1942/43/6/43_6_333/_article/-char/ja/


コメント